Resumen de "Control nervioso del movimiento voluntario" de Carlson, N. R. (2006). Fisiología de la conductaÍndiceCarlson, N. R. (2006). Control del movimiento. En: N. R. Carlson (Ed.), Fisiología de la conducta (8a ed.). Madrid: Pearson-Addison Wesley. Control cortical y subcortical de la actividad motoraToda actividad que hacemos en nuestra vida es una actividad motora. Todas estas actividades motoras son producto de una secuencia ordenada y compleja de contracciones musculares. Ejemplos de actividades motoras:
Tanto caminar como nuestra postura estan muy influenciadas por el sistema vestibular. Hablar es una actividad motora que tiene varios niveles jerárquicos.
¿Cómo hace el sistema motor para realizar una actividad motora de manera (MUY) rápida? Primero percibe información a través de los sistemas sensoriales y propioceptivos. Al realizar esto sentimos inconscientemente el medioambiente y a su vez que tan tensos estan nuestros musculos, que tan relajados estan, donde estamos posicionados, etc. Toda esta información se combina en paralelo. El bipedalismo le agrega complejidad al sistema nervioso ya que caminar es sumamente dependiente de la médula espinal. Hay animales que si les "cortas" la conexión encéfalo-médula pueden seguir caminando. Nuestro sistema nervioso motor por lo tanto tiene varias características:
Dentro del control motor tenemos varios modelos: Control previo: es el control de los músculos previamente aprendido. Depende de la experiencia previa, de la práctica de ese movimiento. Es muy importante y útil en los deportes. Retroalimentación: Cuando hacemos un movimiento y ocurre algo, nos encontramos con un obstáculo o hubo un cambio repentino al que tenemos que adaptarnos, se envía nueva información al cerebro y este responde con información actualizada hacia los músculos para poder ejecutar la actividad sin problemas. Este modelo es lento. Predicción del futuro: es básicamente la combinación de los otros dos modelos para poder anticipar qué es lo que tengo que sentir para hacer cierta actividad. Elementos del sistema motor
Definiciones: Esqueléticos: Se les llama así porque estan pegados al esqueleto, conectados a él mediante tendones. Estriados: Se les llama así por como se ven bajo un microscopio. Cada músculo está formado por un conjunto de fibras musculares, estas fibras son las células del tejido muscular. Dentro de estas fibras musculares hay miofibrillas, que son proteínas y son los elementos contráctiles. Las miofibrillas son filamentos de actina y miosina. El puente de entrecruzamiento es lo que se contrae, acercando la actina a la miosina. 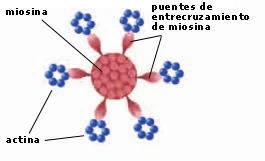 Contracción de los músculos estriados La sinapsis entre el botón terminal de una neurona eferente y la membrana de una fibra muscular se denomina unión neuromuscular. Los botones terminales de las neuronas forman sinapsis en las placas terminales motoras, localizadas en las hendiduras que hay a lo largo de la superficie de las fibras musculares. 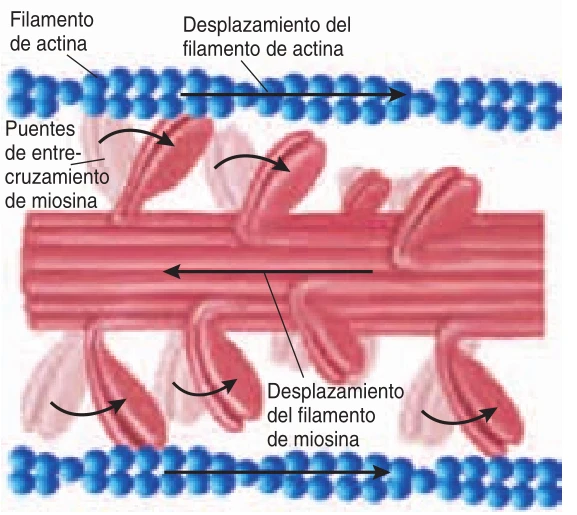 La acetilcolina es el neurotransmisor de la sinapsis neuromuscular. Cuando el axón descarga, se libera el neurotransmisor y este abre los canales dependientes del voltaje del músculo, entra calcio al músculo, y esto hace que se empiece a liberar el calcio interno del músculo, produciendo una despolarización. Dentro de las células del músculo hay calcio pero está "encerrado", cuando entra calcio desde afuera, ese calcio interno se libera y eso le envía una señal a las miofibrillas para que se contraigan. Está despolarizacion se llama potencial de placa terminal. Este potencial de placa terminal es mucho más amplio que el potencial excitatorio postsináptico que ocurre en las sinapsis entre neuronas. El potencial de placa terminar siempre provoca la activación de la fibra muscular y este potencial se propaga a lo largo de la fibra, lo cual induce una contracción de esta fibra. Si bien un único impulso nervioso de una motoneurona produce una única contracción (o sacudida) de una fibra muscular, los efectos de la contracción son considerablemente más prolongados que los del potencial de acción debido a la elasticidad del músculo y al tiempo requerido para librar a la célula del calcio. El calcio es extraído activamente de las células mediante una bomba situada en la membrana. La fuerza de la contracción muscular está determinada por el promedio de frecuencia de descargas de las diversas unidades motoras. Si son muchas las unidades motoras descargando, la contracción será energica, por otro lado si estan descargando pocas, la contracción sera debil. Unidad motoraEs la cantidad de fibras musculares a la que la motoneurona inerva. Una neurona motora puede inervar a muchas fibras musculares o también puede inervar a pocas. Si el músculo realiza movimientos precisos, la unidad motora es más pequeña. Las manos por ejemplo tienen muchas unidades motoras, ya que sus movimientos deben ser precisos. El tronco por otra parte tiene menos unidades motoras ya que sus movimientos son pocos y no deben ser tan precisos. Efectores: músculos esqueléticosLos músculos esqueléticos son los que mueven nuestro cuerpo. Tiene asociado varios sensores. El músculo tiene 2 tipos de fibras:
El huso muscular también se contrae, a su vez tiene terminales de axones de células motoras y sensoriales(los de las fibras intrafusales) Si el músculo es tensionado las fibras intrafusales del huso se contraen y las fibras sensoriales que estan "enroscadas" en ellas envían una señal. Axón motor gamma: está conectado al huso y lo que hace es contraer las fibras intrafusales del huso, cuando estas se contraen se vuelven más sensibles al estiramiento, por lo tanto este axón motor gamma regula la sensibilidad del huso. Las fibras sensoriales del huso se llaman fibras sensoriales de longitud y lo que hacen es detectar qué tan estirada está la fibra intrafusal, NO detectan la tensión. El órgano encargado de detectar la tensión es el Órgano tendinoso de Golgi. El Órgano tendinoso de Golgi se encuentra en los tendones que conectan el músculo con el hueso. La información de estiramiento y tensión se envía en primer lugar a la médula. Tenemos músculos extensores y flexores: Flexor:  Extensor:  Los músculos solo se contraen o dejan de contraer, no se estiran. La contracción del músculo flexor produce la flexión. La contracción de un músculo extensor produce la extensión. Los músculos antigravitatorios (flexores y extensores) son los que usamos para mantenernos de pie. Músculo lisoHay dos tipos:
Ambos estan conectados por el sistema nervioso neurovegetativo. Musculo cardiacoSe halla en el corazón. Tiene un aspecto parecido al del músculo estriado pero actúa como un músculo liso de una sola unidad. El corazón late con regularidad incluso si está desnervado. La actividad neural y ciertas hormonas actúan modulando la frecuencia cardiaca. Un grupo de células en el marcapasos del corazón se activan rítmicamente e inician las contracciones del músculo cardiaco que constituyen el latido cardiaco. Sistema motor gammaAxón motor gamma: está conectado al huso y lo que hace es contraer las fibras intrafusales del huso, cuando estas se contraen se vuelven más sensibles al estiramiento, por lo tanto este axón motor gamma regula la sensibilidad del huso. Cuando los husos musculares están relajados son relativamente insensibles al estiramiento. Pero cuando las motoneuronas gamma se activan, los husos (fibras intrafusales) se acortan y por tanto se vuelven mucho más sensibles a los cambios de longitud del músculo. Por otro lado las motoneuronas alfa inician la contracción muscular. Cuando se inicia la contracción muscular al levantar algún objeto o hacer algún movimiento, si hay poca resistencia, tanto las fibras musculares extrafusales como las intrafusales se contraerán aproximadamente en el mismo grado y se observará poca actividad en los axones aferentes del huso muscular. Pero si la extremidad encuentra resistencia(el objeto es muy pesado por ejemplo), las fibras musculares intrafusales se acortarán más que las extrafusales, de modo que los axones sensoriales empezarán a descargar y provocarán que el reflejo miotático monosináptico refuerce la contracción. Así pues, el cerebro se sirve del sistema motor gamma para mover las extremidades. Estableciendo una frecuencia de descarga en el sistema motor gamma, el encéfalo controla la longitud de los husos musculares e, indirectamente, la longitud de todo el músculo. Médula espinalEn el reflejo de estiramiento hay una sinapsis sola y dos células, una sensorial y una motora. Se pueden encontrar neuronas inhibitorias que inhiben al músculo antagonista. Este reflejo se le conoce como miotático monosináptico, es el único reflejo medular conocido que implique una única sinapsis. Todos los demás reflejos son polisinápticos. Hay procesamiento motor al nivel de la médula. Hay actividades motoras como caminar que estan delegadas a la medula. Si bien podemos pensar desde el cerebro y ejecutar órdenes sobre la velocidad a la que caminamos, la contracción de los músculos es controlada por la médula. Este nivel de control medular se llama circuito local. Los reflejos y el generador de patrones (caminar utiliza uno) se encuentran en la médula. Hay dos grandes grupos de fibras que controlan el movimiento.
Las fibras del grupo lateral son:
Fibras del grupo ventromedial:
Decusar: cruzarse hacia el lado contralateral del cuerpo Los haces de la médula del grupo lateral decusan al nivel del bulbo. Los haces del grupo ventromedial en general no decusan. Tabla del grupo lateral: Fascículos
Tabla del grupo ventromedial: Fascículos
Corteza - Actividad motoraLa actividad motora depende de varias partes del cerebro. La corteza motora primaria se halla en la circonconvulsión precentral. Está inmediatamente delante de la cisura de Rolando. Las neuronas de la corteza motora primaria son las que envían señales a las regiones subcorticales como el tronco encefálico, médula, etc. La corteza premotora e incluso la corteza somatosensorial también mandan señales a regiones subcorticales. 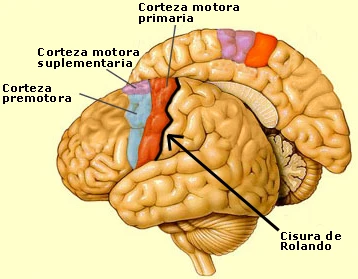 Para realizar una acción motora debemos usar distintas partes del cuerpo, tenemos que saber nuestra posición pero también la posición de nuestras piernas, usar la visión, etc. Todas esas señales de otras partes del cerebro van primero a la corteza premotora y después a la corteza primaria. Las regiones de la corteza frontal implicadas en la planificación del movimiento reciben desde los lóbulos temporal y parietal la información que necesitan sobre qué está sucediendo y donde está sucediendo. Corteza motora primaria
Cada neurona responde a un tipo específico de movimiento en determinada dirección, por ejemplo, hacía delante a la izquierda. La estimulación breve produce movimientos simples. La estimulación sostenida genera movimientos complejos. Corteza suplementariaLa corteza motora suplementaria es medial. Su estimulación produce el deseo de moverse.
Un determinado grupo de neuronas se activa si tenemos que tirar y después empujar algo, como una palanca. Sin embargo no se activan si lo que tenemos que hacer es empujar y después tirar. Si esta sección del cerebro se inhibe, somos incapaces de hacer movimientos secuenciales. La corteza motora suplementaria tiene la capacidad predictiva de saber 2 o 3 segundos antes que movimientos decidimos realizar. Si nos lesionamos la corteza parietal posterior presentamos dificultades a la hora de decidirnos cuando fue el momento en que decidimos hacer el movimiento. En la corteza prefrontal (fronto polar) se puede ver que casi 10 segundos antes ya se sabe qué movimientos haremos. Por lo tanto la secuencia de movimientos que hace la señal en el cerebro es así:
Corteza premotoraControla los movimientos arbitrarios. Si la corteza premotora se inhibe, somos incapaces de realizarlos. Si tenemos lesiones en la corteza premotora tampoco podemos realizar movimientos arbitrarios. En la corteza premotora ventral y en otras partes del cerebro tenemos neuronas espejo. Estas neuronas espejo se activan cuando hacemos determinada acción y también se activan cuando vemos a alguien hacer la misma acción o una similar. Las neuronas espejo son las encargadas de la imitación. También detectan la acción "detrás" del movimiento. La intención del movimiento. Por ejemplo: Se activan cuando vemos a alguien agarrar un vaso para tomar agua, pero no se activan si vemos a alguien agarrar el mismo vaso para lavarlo. Lo importante acá es el contexto, en ambas situaciones el contexto es percibido. Cuando el vaso se agarra para tomar agua es evidente que es para ello, la mesa está servida, la comida está en la mesa, quizás la persona acaba de servirse agua en el vaso, etc. En cambio cuando se lo agarra para lavarlo, el contexto cambió, los platos estan sucios, se estan levantando de la mesa, etc. Alcanzar y tomar objetos Estos movimientos no son arbitrarios, este movimiento hacia objetos depende del lóbulo parietal. Cada movimiento (alcanzar y agarrar) tiene dos regiones separadas para cada uno.
Si tenemos lesiones en el lóbulo parietal podemos llegar a tener problemas a la hora de agarrar objetos. ApraxiasSon distintas a las parálisis. Las apraxias se producen por las lesiones en el cuerpo calloso, lóbulo frontal o lóbulo parietal. Las apraxias son la incapacidad de realizar ciertos movimientos específicos, por ejemplo: Si te dicen que imites un movimiento, o que hagas cierta acción, o que intentes abrir una puerta con una llave. Hay 4 tipos de apraxias: Apraxia de los miembros: Si hay lesiones parietales y frontales izquierdas. Es la dificultad de movimiento de los brazos, manos y dedos. La persona no puede imaginar el movimiento que debe hacer para abrir una puerta si le es ordenado que abra la puerta. Tampoco puede imitar un movimiento. 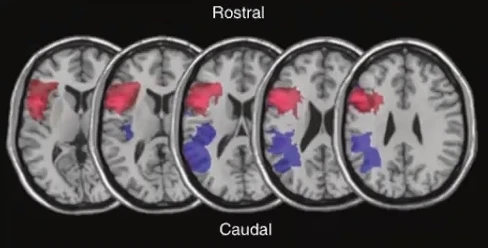 Se pueden definir 3:
Apraxia oral: la persona es incapaz de producir movimientos orofaciales vinculados (a veces) al habla. Dificultad de movimiento de los músculos utilizados para hablar. Agrafia apráxica: la persona presenta dificultad de escritura Apraxia de construcción: Dificultad para dibujar o construir. Se presenta cuando hay lesiones en el lóbulo parietal derecho. La persona es incapaz de transformar un objeto geométrico espacial en un comando motor. Por ejemplo cuando se le pide que dibuje un cubo. Estructuras subcorticalesFuera de la corteza de los hemisferios cerebrales tenemos varias estructuras grises, entre ellas estan:
Los núcleos motores de los ganglios basales son:
Al Putamen y a el Núcleo caudado colectivamente se les llama "Núcleo estriado"
En el cerebro medio tenemos la sustancia negra, no es un ganglio de la base pero está conectado con el funcionamiento de ellos. Hay aferencias que hacen un bucle, eso quiere decir que salen de la corteza, van a los ganglios de la base y vuelven de nuevo a la corteza. A lo largo de todo estos circuitos la información está representada de forma somatotópica. Las proyecciones de las neuronas de la corteza motora que producen el movimiento de zonas concretas del cuerpo proyectan a zonas concretas del putamen, y esta separación de las fibras se mantiene a lo largo de todo el trayecto de retorno hasta la corteza motora. Estas aferencias tienen dos vías o caminos: Vía directa: Corteza > núcleo caudado y putamen > globo pálido interno > núcleos ventrolaterales y ventral anterior del tálamo > corteza Vía indirecta: Corteza > núcleo caudado y putamen > globo pálido externo > núcleos subtalamicos > globo pálido interno > núcleos ventrolaterales y ventral anterior del tálamo > corteza Funcionamiento de la vía directa: Las proyecciones que van desde la corteza al núcleo estriado son excitatorias. Las proyecciones que van desde el núcleo estriado al globo pálido interno y externo son inhibitorias. Las proyecciones que van desde el globo pálido interno a los núcleos del tálamo (ventrolaterales y ventral anterior del tálamo) son inhibitorias. Por su parte los núcleos del tálamo envían proyecciones excitatorias a la corteza. Lo que ocurre entonces es lo siguiente, cuando la corteza excita al núcleo estriado este por su parte inhibe al globo pálido interno, al ser inhibido deja de inhibir a los núcleos del tálamo y por lo tanto este último comienza a excitar a la corteza. Hay que verlo de esta forma: Si una proyección excitatoria termina en un núcleo que excita, el núcleo va a excitar. Si una proyección excitatoria termina en un núcleo que inhibe, el núcleo va a inhibir. Si una proyección inhibitoria termina en un núcleo que excita, este va a dejar de excitar. Si una proyección inhibitoria termina en un núcleo que inhibe, este va a dejar de inhibir. Funcionamiento de la vía indirecta: Las proyecciones que van desde la corteza al núcleo estriado son excitatorias. Las proyecciones que van desde el núcleo estriado al globo pálido externo son inhibitorias. Las proyecciones que van desde el globo pálido externo a los núcleos subtalamicos son inhibitorias. Las proyecciones que van desde los núcleos subtalamicos al globo pálido interno son excitatorias. Las proyecciones que van desde el globo pálido interno a los núcleos del tálamo son inhibitorias. Las proyecciones que van desde los núcleos del tálamo a la corteza son excitatorias. Entonces lo que ocurre es lo siguiente: La corteza excita al núcleo estriado, este inhibe al globo pálido externo y por lo tanto este deja de inhibir a los núcleos subtalamicos, esto hace que el núcleo subtalámico comience a excitar al globo pálido interno lo cual hace que este comience a inhibir a los núcleos del tálamo, y por lo tanto este deja de excitar a la corteza. Entonces podemos ver que ambas vías tienen dos finales, uno excitatorio y otro inhibitorio. La vía directa excita a la corteza. La via indirecta inhibe a la corteza. La sustancia negra influye en estas vías a través de dos sistemas dopaminérgicos. La dopamina liberada por la sustancia negra puede tener dos efectos:
Sin embargo estos efectos estan definidos segun sobre cual via afecten. La dopamina es excitatoria sobre las neuronas de la vía directa. La dopamina es inhibitoria sobre las neuronas de la vía indirecta. Lo que ocurre entonces es que al excitar la vía directa, como está ya es de por sí excitatoria, sigue excitando a la corteza. Sin embargo como inhibe a la vía indirecta, como está estaba inhibiendo, al ser inhibida deja de inhibir a la corteza. La degradación del fascículo nigroestriatal, que es la vía que va desde la sustancia negra hacía el núcleo estriado es una de las causantes involucradas en el mal de Parkinson. Enfermedad de ParkinsonEs provocado por la degradación del fascículo nigroestriatal, que es la vía dopaminérgica que va desde la sustancia negra hasta el núcleo estriado. Manifestaciones clínicas:
Enfermedad de HuntingtonSe produce una sobreestimulación de la corteza motora. Presenta movimientos anormales involuntarios de partes individuales del cuerpo. Es una enfermedad progresiva y causa la muerte. Se produce por una inhibición del núcleo estriado. O sea se debe a la degeneración del núcleo estriado. Manifestaciones clínicas:
CerebeloTiene su propia corteza y núcleos profundos diversos. Partes del cerebelo visto desde atrás (vista dorsal) 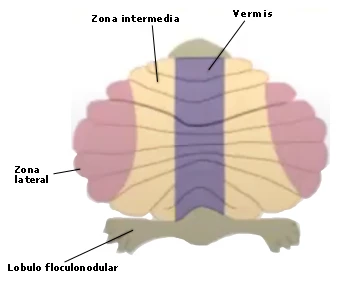 Cada una de estas partes hace cosas diferentes mayoritariamente. Lóbulo floculonodular: conecta con el núcleo vestibular y por lo tanto tiene que ver con el control de la postura. Vermis: conecta entre otras cosas con el fascículo vestibuloespinal, también vinculado a la postura. A través del tracto espinocerebelar llega información cutánea y propioceptiva al Vermis. El Vermis también recibe información auditiva y visual procedente del tectum. Desde la corteza cerebral llega información a la zona intermedia y desde ahí se dirige al núcleo rojo, esto tiene que ver con los movimientos de brazos (NO manos) y piernas. Zona lateral del cerebelo: Hay aferencias que se originan en la corteza motora primaria, van al núcleo pontino y después a la corteza lateral del cerebelo. En esta zona se recibe información somatosensorial también. Toda esta información después vuelve a la corteza cerebral. El cerebelo se encarga de predecir los movimientos, de calcular las correcciones de estos movimientos. El cerebelo hace el cálculo de los movimientos finos en el espacio. A su vez hace las correcciones de los movimientos a tiempo real. El cerebelo es una zona de aprendizaje muy importante. Aprender a bailar, tocar un instrumento, etc. Es una de las zonas primarias de aprendizaje. Formación reticular
|
Facultad de Psicología (UdelaR)
Dispositivos de atención frente a situaciones de violencia, acoso y discriminaciónEspacios de atención para quienes sienten que están transitando situaciones de acoso y discriminación, y/o para quienes presencian o conviven con situaciones de violencia. Clases particulares
¿Necesitás ayuda con alguna materia?Clases por Zoom, tutorías grabadas y guías con todo el material listo para estudiar. Preparás temas, parciales y exámenes con acompañamiento personalizado. Guías de Facultad ¿Tenés dudas sobre cómo funciona Facultad de Psicología? |