Resumen de "Sistemas y vías sensoriales" de Carlson, N. R. (2006). Fisiología de la conductaÍndice
Carlson, N. R. (2006). Fisiología de la conducta (8a ed.). Madrid: Pearson-Addison Wesley. PercepciónLa percepción es un proceso activo. Proceso de la percepción:
Dentro de estos órganos sensoriales existen células receptoras sensoriales que realizan un proceso llamado transducción. Transducción: es la conversión de la energía del estímulo en un cambio de potencial de membrana. Ese cambio va a modificar la liberación de neurotransmisores de esa célula y esa variación en la liberación de neurotransmisores va a alterar el funcionamiento de las siguientes neuronas de la vía.
En las areas de asociacion es donde se integra la información proveniente de varias vías sensoriales, además esa información se junta con nuestros conocimientos previos y nuestras memorias y emociones, y es ahí donde se produce la percepción. TransducciónLos receptores sensoriales son células especializadas para captar ciertos tipos de energía. Se llaman células receptoras. Cuando llega el estímulo a esa célula receptora va a sufrir cambios en su potencial de membrana. Ese cambio se llama potencial receptor. Dependiendo si la célula receptora tiene axón o no, pueden pasar dos cosas:
En este último caso la siguiente neurona de la vía sensorial, al recibir ese cambio de neurotransmisores va a sufrir un cambio en su potencial de membrana y por lo tanto va a cambiar la producción de sus potenciales de acción. Ejemplos de transducción
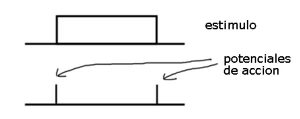
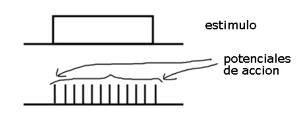
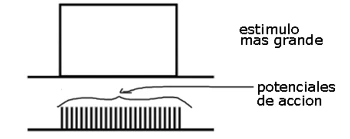
El estímulo mecánico va a deformar la estructura (soma) y eso va a generar el potencial receptor. 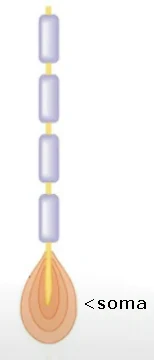 A su vez la cantidad de potenciales de acción producidos por la célula receptora va a variar dependiendo de la intensidad del estímulo. Un estímulo pequeño va a producir menos potenciales de acción que un estímulo más grande.
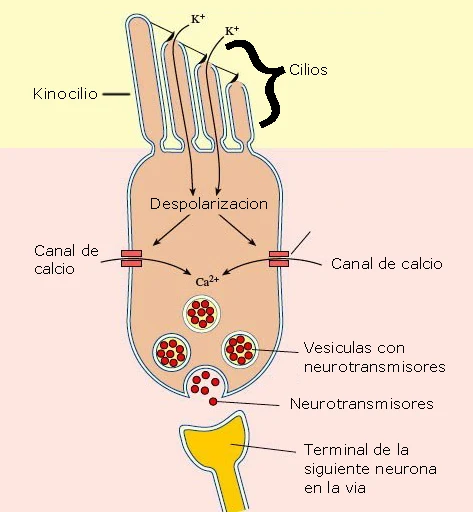 La despolarización abre los canales de Ca+ y entonces se liberan neurotransmisores, estos neurotransmisores serán recibidos por la siguiente neurona en la vía que al recibirlos modificara su actividad en respuesta. Tabla de sistemas, células y características
El órgano sensorial no es lo mismo que el receptor sensorial. Cuando se habla del órgano sensorial se habla de todo. Cuando se habla del receptor sensorial se habla de la célula especializada que realiza la transducción.
CódigoCuando se habla de las vías sensoriales hay que tener en cuenta el código. Este es un sistema de símbolos que representan información. Cuando se conoce el código se puede descifrar el mensaje. En el sistema nervioso todo se codifica por medio de potenciales de acción. El sistema nervioso maneja dos tipos de código para la información sensorial:
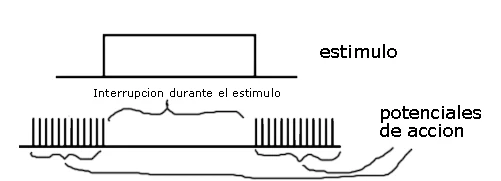
Codigos temporales:
Hay más formas de codificar características del estímulo mediante la actividad de potenciales de acción a lo largo del tiempo. Estímulo y sensaciónMínima diferencia notable (jnd): Es el menor cambio en la magnitud de un estímulo que una persona puede detectar. Es directamente proporcional a la intensidad del estímulo. Por ejemplo: Si sostenemos algo de 1kg con una mano y algo de (500g) con la otra mano, notamos la diferencia, sin embargo si sostenemos algo que pesa 10 kg con una mano y con la otra mano sostenemos algo que pesa 9.5kg va a ser más difícil notar la diferencia.
Umbral absoluto de detección: es la mínima intensidad que tiene que tener el estímulo para ser detectado. Por ejemplo: cuál es la mínima cantidad de luz que podemos percibir. Este umbral es subjetivo ya que varía con esas 3 cosas antes mencionadas. Umbral de diferencia: es la diferencia mínima detectable entre dos estímulos. No hay que confundir el umbral absoluto de detección con el umbral del sistema de detección del estímulo ya que un estímulo puede ser detectado por el sistema pero podemos no percibirlo. VisiónEs nuestro principal sentido. La percepción visual es una creación de nuestro cerebro. El estímulo para la percepción visual es la radiación electromagnética. La radiación electromagnética tiene las propiedades de cualquier radiación de ondas. La longitud de ondas: es la distancia que hay entre dos crestas de la onda. 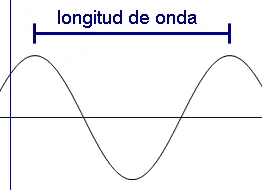 La frecuencia es inversa a la longitud de onda. Cuanto más pequeña sea la longitud de onda, más ondas van a entrar en ese periodo de tiempo. |________________________________________| << 1 minuto 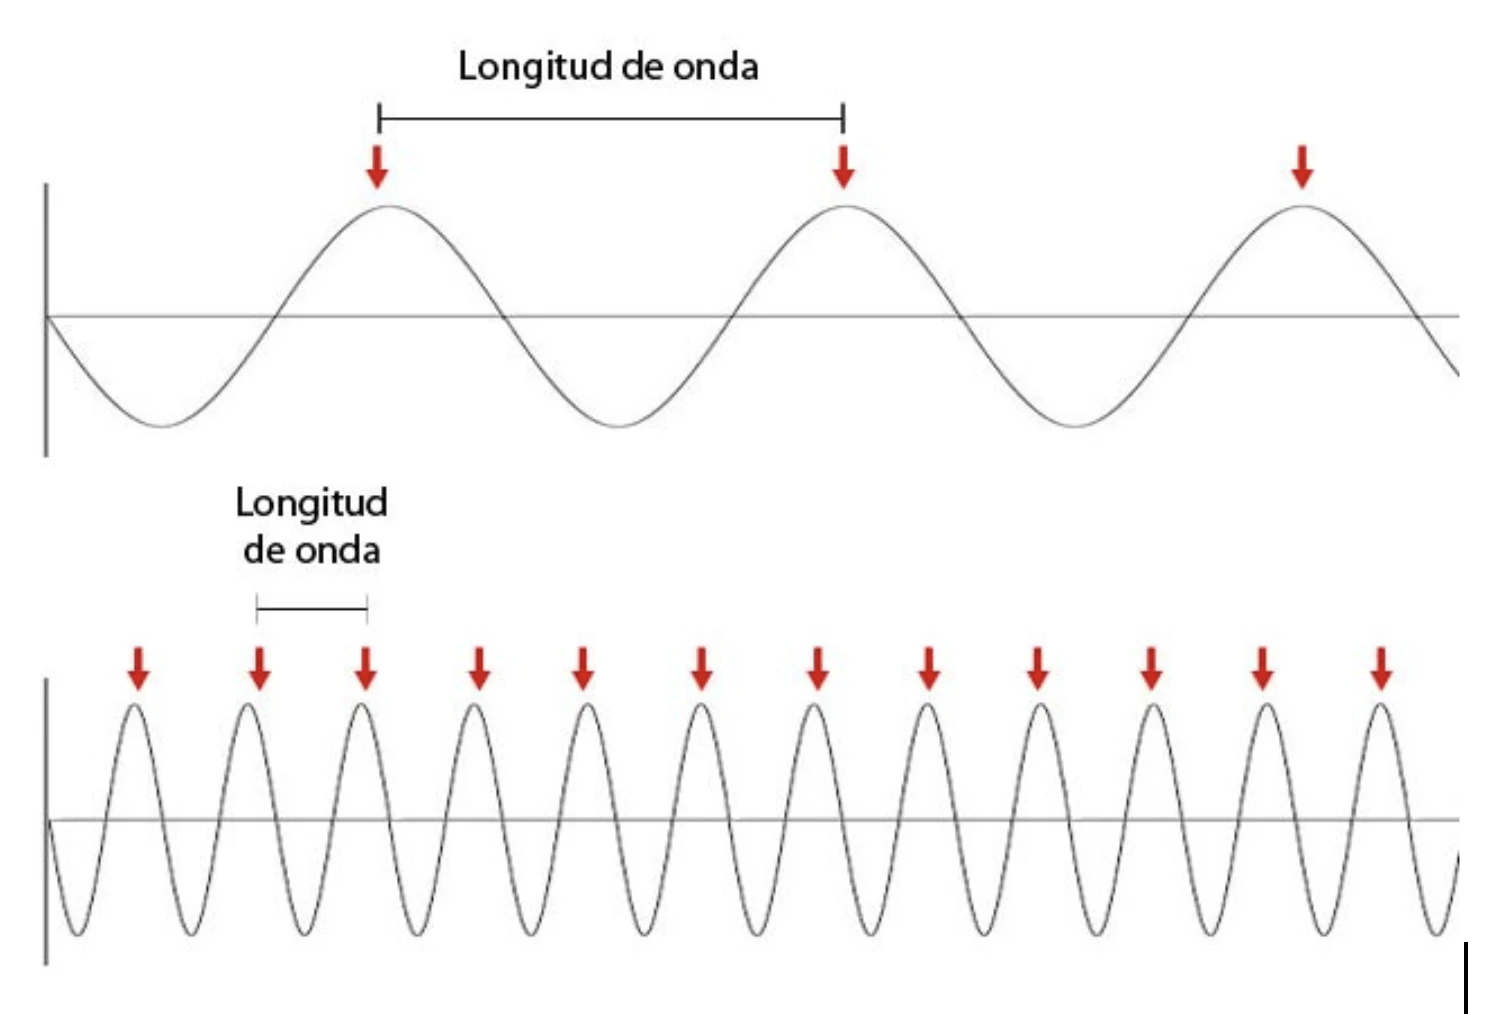 Tipos de radiaciones electromagnéticas (todas son el mismo tipo de energía)
Los humanos solo podemos percibir la luz visible (llamada así justamente por eso) que está comprendida entre las longitudes de onda de aproximadamente 380 nanómetros y 770 nanómetros. Al percibir estímulos de esta radiación electromagnética podemos observar 3 propiedades:
OjosLos ojos son los órganos especializados para percibir la luz. Los ojos están en posiciones ligeramente distintas. Se encuentran en cavidades del cráneo llamadas órbitas. Están sujetos a esas cavidades por músculos y tendones. Las órbitas protegen a los ojos, a su vez tienen protecciones adicionales como:
Estructura del ojo
La parte anterior del ojo es la que está externa a la cara, y es la que podemos tocar con los dedos (no lo intenten, ojo (jaja) con el coronavirus)
Cuando la pupila se dilata se le llama midriasis. Cuando la pupila se contrae se le llama miosis.
Esos movimientos que hace el Cristalino se le llaman acomodación y estan regulados por la contracción de los músculos ciliares. 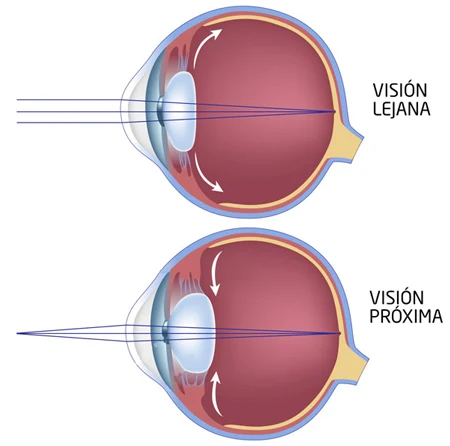
Enfermedades visuales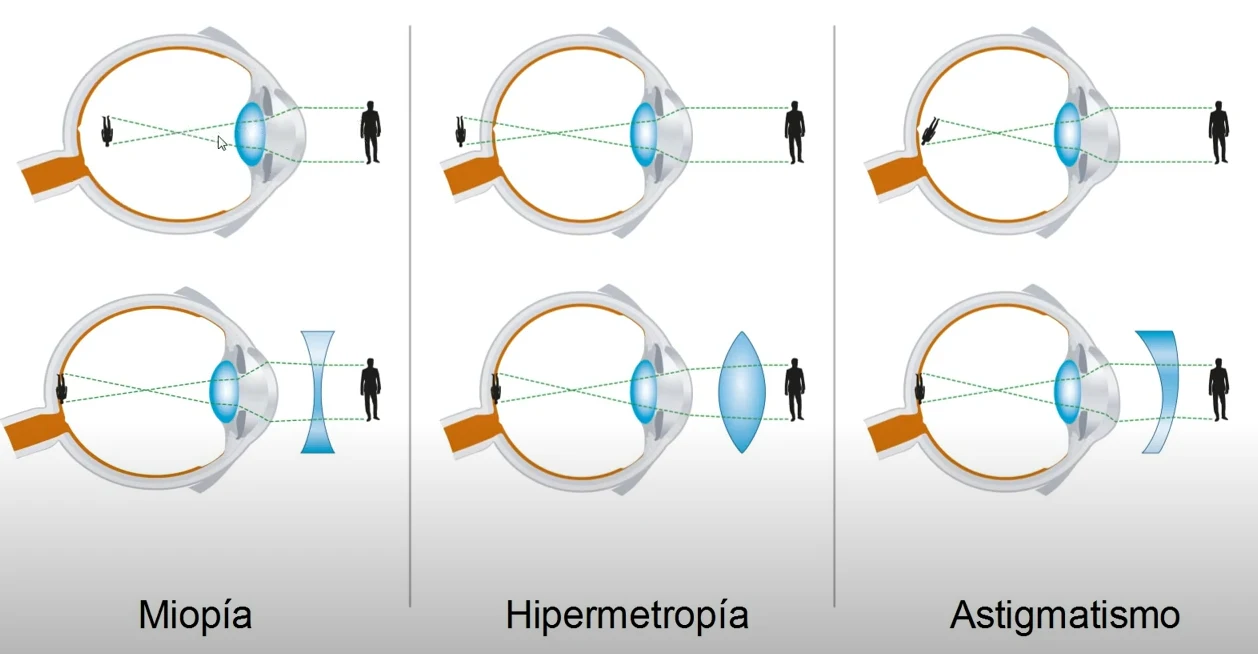 Los ojos pueden tener distintas formas. En la miopía el ojo es un poco más largo de lo normal y por lo tanto la imagen "no llega" clara hasta la fóvea, para solucionar esto se usa un lente bicóncavo. En la hipermetropía el ojo es un poco más corto de lo normal, y por lo tanto la imagen proyecta más atrás de la fóvea, para solucionar este problema se usa un lente convexo. En el astigmatismo hay una asimetría en la córnea y para solucionarlo se usa un lente asimétrico Músculos del ojoTenemos 6 músculos que permiten los movimientos del ojo. Están unidos a la esclerótica.
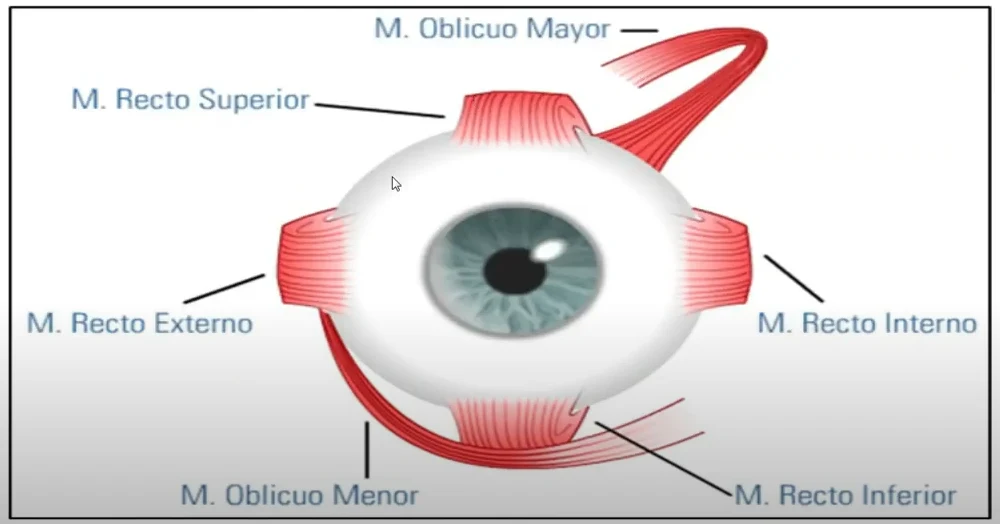 El músculo Recto Interno del ojo derecho es el que está hacia la nariz y el músculo Recto Interno del ojo izquierdo es el que va hacía la nariz, a su vez el recto externo es el que está siempre contra el borde de la cara. El globo ocular está recubierto por la conjuntiva, que es la membrana mucosa que recubre el interior del párpado también. Es esta la que evita que un lente de contacto se vaya para la parte de atrás del ojo, por ejemplo. RetinaEs la parte más importante del ojo. Es considerada como parte del sistema nervioso central. 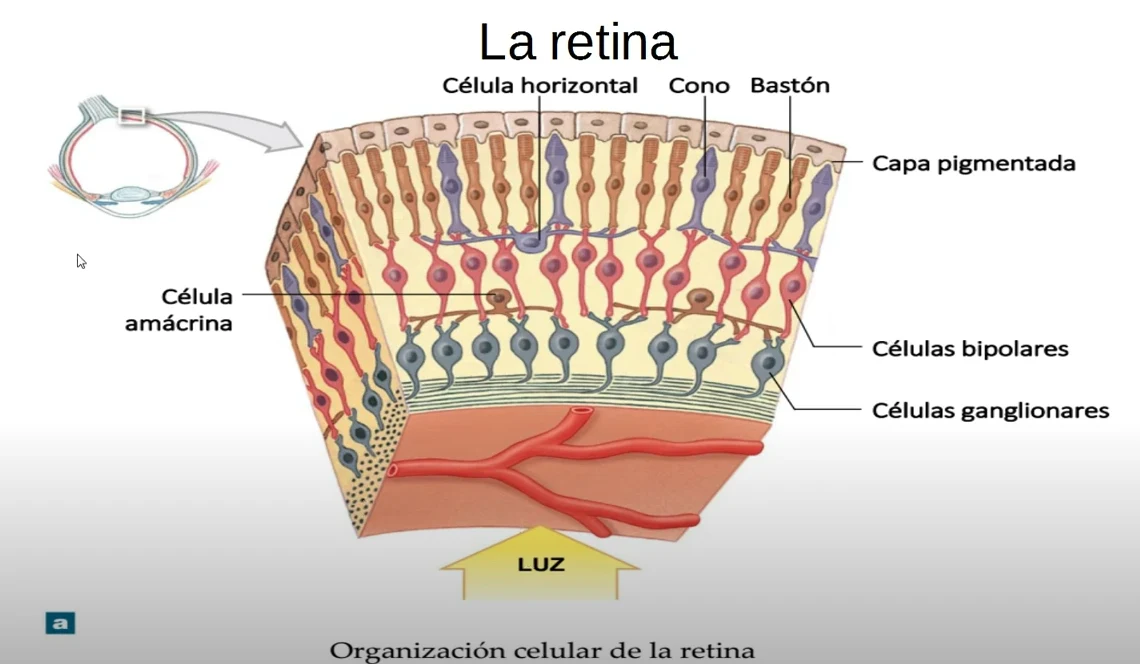 Hay dos tipos de fotorreceptores:
Capa de células pigmentadas: su función es absorber la luz que no fue captada por los fotorreceptores para que no rebote y cause distorsiones en la imagen. Células bipolares: conectan los fotorreceptores a las células ganglionares. Células ganglionares: son la primer célula de la vía visual que produce potenciales de acción. Los axones de estas células ganglionares son los que forman el nervio óptico. Células amacrinas: conectan entre sí a varias células ganglionares. Células horizontales: conectan entre sí a varios fotorreceptores. 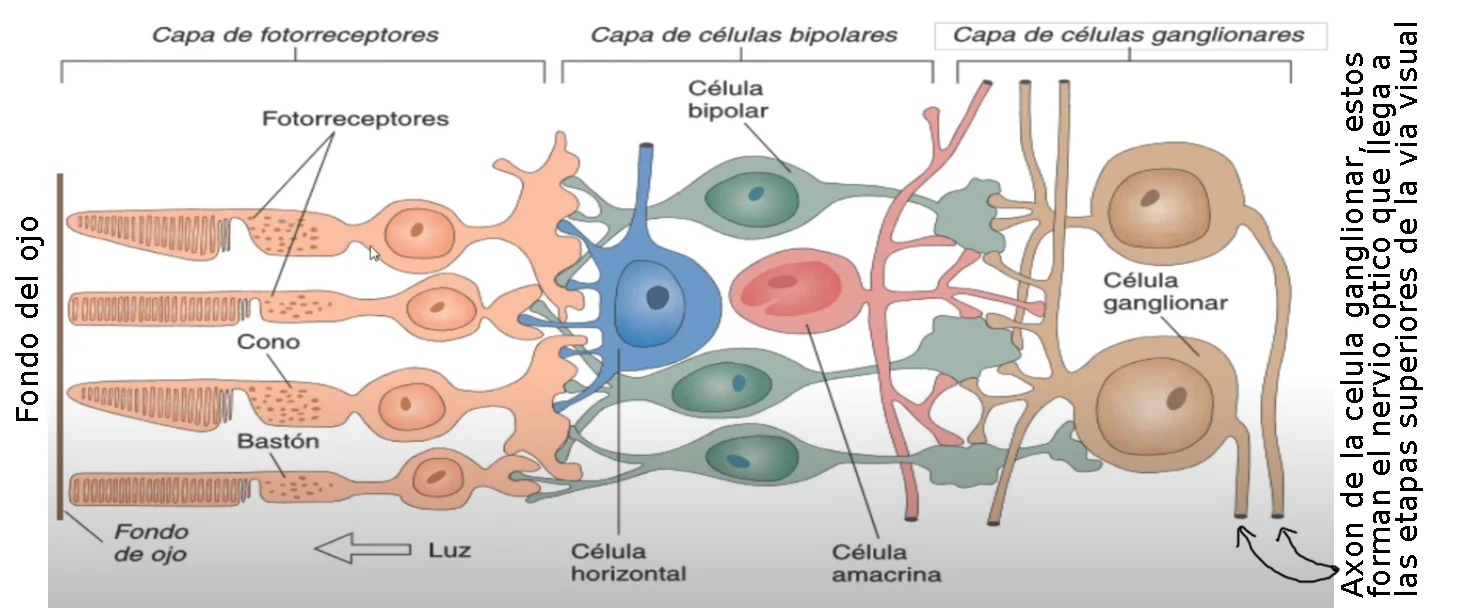 Células ganglionaresLas células ganglionares son las primeras células de la vía visual en generar potenciales de acción. Tenemos muchos tipos de células ganglionares. En los ratones por ejemplo se descubrieron al menos 30, por lo que se asume que los humanos tengamos aún más. El axón de las células ganglionares forman el nervio óptico. Estas células están conectadas con las células amacrinas y las células bipolares. Reciben información de los fotorreceptores a través de las células bipolares. Los neurotransmisores despolarizan estas células lo que causa que aumenten su producción de potenciales de acción cuando los fotorreceptores que están conectados por medio de las células bipolares a ellas son estimulados. Hay algunas células ganglionares que reducen su producción de potenciales de acción como respuesta a la luz. Con respecto a las postimágenes negativas (experimento del rábano) se deben a la adaptación de la tasa de descarga de las células ganglionares. Cuando las células ganglionares son excitadas o inhibidas durante un largo periodo de tiempo, muestran después un efecto de rebote, descargando más rápida o lentamente de lo normal. Punto ciegoSe encuentra en el disco óptico de la retina. Donde se juntan todos los axones de las células ganglionares y sale el nervio óptico del ojo no hay fotorreceptores. Está partesita donde sale el nervio optico del ojo se le llama punto ciego. Sin embargo el punto ciego no lo vemos cuando utilizamos la vista, esto sucede por dos razones:
FotorreceptoresDisco: son pliegues de la membrana, es donde están los fotopigmentos. También son llamados discos de membrana. 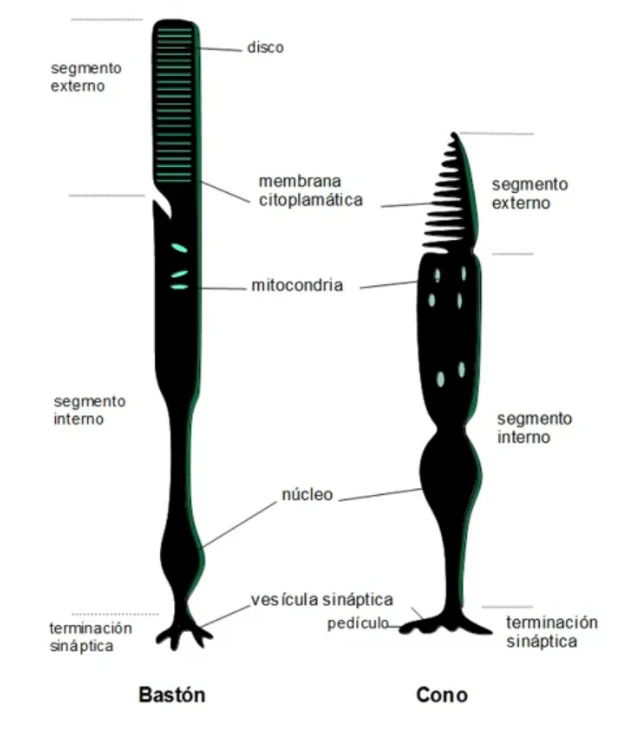 Conos: tienen menor sensibilidad a la luz, por lo tanto tienen un umbral más alto y necesitan más cantidad de luz para provocar en ellos un cambio.
Hay 3 tipos de conos, cada uno de ellos responde mejor a distintas longitudes de onda.
Es necesario aclarar que los conos no son de estos colores, solo se llaman así. La retina contiene aproximadamente la misma proporción de conos rojos que de verde, pero un número mucho menor de conos azules (8% del total de conos) Bastones
En la retina tenemos muchos más bastones que conos.
Distribución de conos y bastones en la retinaLa distribución de conos y bastones no es homogénea. No están mezclados en forma pareja sino que tienen una distribución particular. En la fóvea solo tenemos conos, muchísimos, y estan todos juntos. La fóvea es el lugar de la retina donde tenemos la mayor agudeza visual. La mayor capacidad de distinguir: objetos, colores, formas, movimientos, etc. A los costados de la fóvea tenemos bastantes conos pero también hay bastones. En las partes periféricas, las más alejadas de la fóvea tenemos mayoritariamente bastones y muy pocos conos. Tenemos conos en toda la retina pero su concentración aumenta a medida que nos acercamos a la fóvea, en la cual únicamente tenemos conos. Con excepción de la fóvea, tenemos bastones en toda la retina. Fóvea
Debido a que la fóvea es la parte de la retina que mejor percibe la información visual, lo que hacemos al mirar el entorno es "pasar" la fóvea por lo que estamos viendo al mover el ojo. Movimientos del ojoEl ojo tiene 3 tipos de movimientos:
Los ojos no realizan un escaneo de arriba hacía abajo y de derecha a izquierda, sino que saltan hacia los puntos de interés de lo que estamos observando. Por ejemplo caras u objetos relevantes o que consideramos relevante en ciertos contextos. Niveles jerárquicos del sistema visualDe nivel más bajo al más alto:
Transducción de la señal lumínica en los fotorreceptoresBastones: 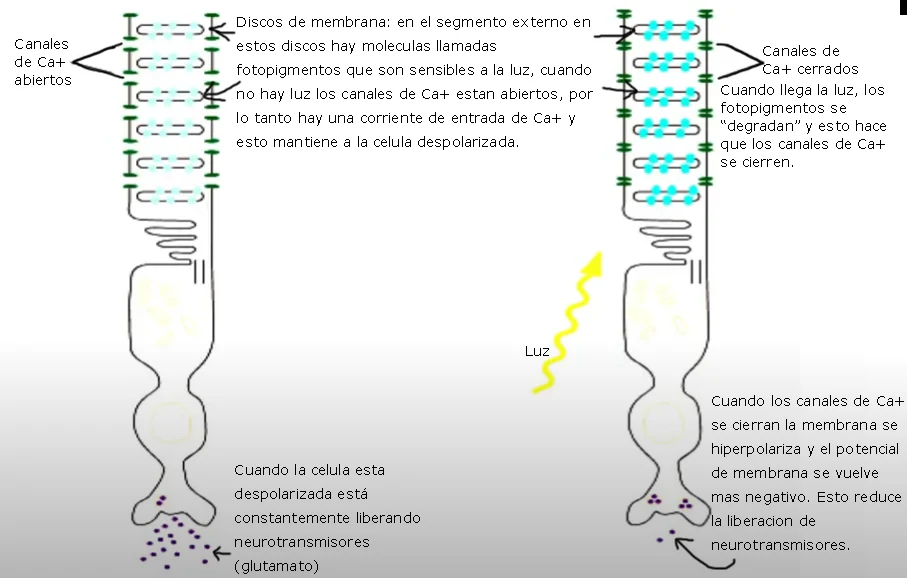 Cuando el fotorreceptor se hiperpolariza deja de liberar el neurotransmisor glutamato. Una de las células "conectadas" a los fotorreceptores son las células bipolares, mientras la célula bipolar esté recibiendo neurotransmisores va a estar hiperpolarizada, eso produce un cambio en su potencial de membrana el cual es un potencial graduado y va a depender de la cantidad de neurotransmisores que reciba. Cuando la célula bipolar deja de recibir neurotransmisores su potencial de membrana se despolariza, al despolarizarse la célula bipolar empieza a liberar neurotransmisores en su terminal. Este neurotransmisor también es glutamato. Hay que aclarar que la célula bipolar que se hiperpolariza cuando recibe neurotransmisores(glutamato) del fotorreceptor es sólo la del tipo centro ON, porque tiene receptores de glutamato diferentes, que le hacen un efecto inhibitorio cuando se unen al glutamato. Es una excepción, porque por lo general el glutamato es excitatorio. Se puede decir que la luz hiperpolariza los fotorreceptores y despolariza las células bipolares. Ni los bastones ni la célula bipolar producen potenciales de acción. Cuando la célula ganglionar, que es una de las células conectadas a la célula bipolar, recibe los neurotransmisores y detecta el aumento de estos neurotransmisores que está recibiendo, va a aumentar la cantidad de potenciales de acción que produce. Hay que tener en cuenta sin embargo que la célula ganglionar sólo produce potenciales de acción si la cantidad de neurotransmisores que recibe es suficiente para que el cambio de polaridad en su membrana alcance el umbral. Mientras más neurotransmisores reciba, más potenciales de acción produce. Campo receptivoEl campo receptivo de una neurona es el sector del campo visual donde tiene que llegar la luz para que esa neurona responda. Cuando menor sea el campo receptivo, mayor detalle. El campo receptivo de las células ganglionares está organizado en centro y periferia. Si el estímulo cae en la periferia del campo receptivo la respuesta de la célula ganglionar va a ser opuesta a la respuesta que se produce cuando el estímulo cae en el centro del campo receptivo. 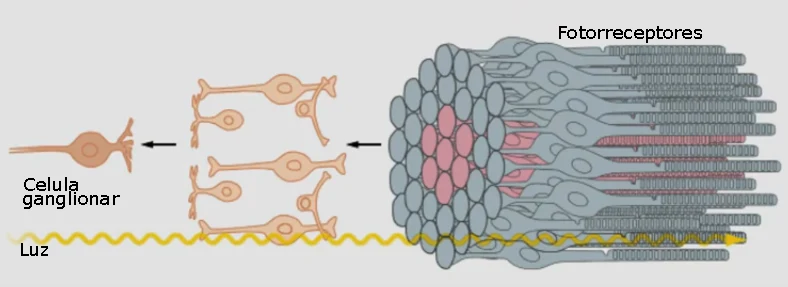
Si nos basamos en el tipo de respuesta de la célula ganglionar según donde caiga el estímulo, encontramos que hay dos tipos:
Este tipo de organización de los campos receptivos de las células ganglionares nos sirve para detectar mejor los contrastes y los objetos en movimientos. El glutamato es el material excitatorio del sistema nervioso. Las células bipolares también estan organizadas en células de centro ON y OFF. La fóvea es el lugar donde las células ganglionares tienen el campo receptivo más pequeño. En la fóvea cada fotorreceptor está conectado a una única célula ganglionar. En su periferia una única célula ganglionar puede recibir información de muchos fotorreceptores a través de muchas células bipolares. Esto permite abarcar más sectores del campo visual pero con menos precisión. Este tipo de campo receptivo de las células ganglionares nos permiten aumentar la percepción de los:
Codificación del color en las células ganglionaresLas células ganglionares funcionan con código de color opuesto. Tenemos dos tipos de células ganglionares sensibles al color.
A su vez estas células ganglionares funcionan con respuestas opuestas que dependeran si el estímulo cae en el centro o la periferia de su campo receptivo, que eran las ON y OFF. Por lo tanto tenemos células ganglionares Amarillo - Azul ON y OFF y Rojo Verde ON y OFF. 4 tipos de células en total:
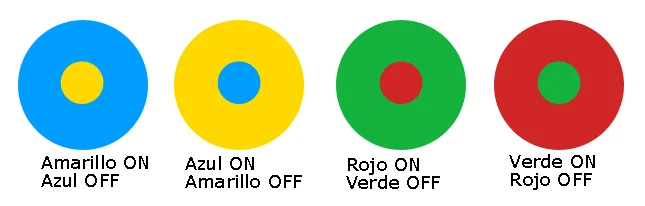 Sin embargo si se la ilumina con luz azul en su centro o luz amarilla en su periferia va a disminuir su producción de potenciales de acción. Los conos fotorreceptores responden mejor a la luz de ciertas longitudes de onda y por lo tanto responden mejor a ciertos colores. Cuando recibimos luz roja, el cojo rojo se estimula y estimula a la célula ganglionar rojo verde, esa célula ganglionar va a producir la "Sensación" del color rojo. Las células ON detectan objetos luminosos sobre un fondo oscuro. Las células OFF detectan objetos oscuros sobre un fondo luminoso. Alteraciones de la visión en colorProtanopia: confunde rojo con verde. Los conos rojos tienen el pigmento de los verdes. Esto no solo altera rojo con verde sino todas las combinaciones de ese color. Deuteranopia: Confunden rojo con verde. Los conos verdes tienen el pigmento de los rojos. Tritanopia: No tiene conos azules, todo se ve en tonos de rojo y verde y sus respectivas combinaciones. Acromatia o Acromatopsia: Tiene alteraciones en los conos. Ven en blanco y negro. Es una enfermedad muy rara y congénita. La percepción del color no depende solamente de la luz que estimula a los fotorreceptores, sino que nuestro cerebro para percibir el color tiene en cuenta otros factores como la luminosidad. Sistema visualCada una de las retinas se puede dividir en 2.
La información proveniente de ambas hemirretinas nasales se cruza en el Quiasma óptico y finalizan en el núcleo geniculado lateral dorsal del lado contrario. Por lo que el núcleo del lado derecho recibe información de la herrimetina nasal izquierda y de la hemirretina temporal derecha, y el núcleo del lado izquierdo recibe información de la hemirretina nasal derecha y de la hemirretina temporal izquierda. Solo las hemirretinas nasales se cruzan, las hemirretinas temporales siguen por el mismo lado del cerebro. De la retina sale el nervio óptico hasta el Quiasma óptico, desde allí sale la cintilla óptica y termina en una estación de relevo de la vía visual llamada cuerpo geniculado lateral, desde ahí sigue una parte llamada Radiación óptica hasta llegar a la corteza visual primaria. En partes:
Todo lo que vemos en el campo visual derecho será procesado en la corteza visual primaria izquierda, y viceversa. Esto ocurre debido al cruce en el Quiasma óptico. El cuerpo geniculado lateral se encuentra en el núcleo geniculado lateral que es un núcleo del tálamo. El núcleo geniculado lateral está formado por seis capas de neuronas y cada una de estas capas recibe aferencias solamente desde uno de los ojos. Corteza visual primariaRetinotopia: es la representación en la corteza del campo visual. La información que viene de la fóvea está más representada en la corteza que la información que viene de la periferia. En la corteza primaria visual se procesan varias propiedades de los estímulos y se integra la información de los dos ojos. A la corteza visual primaria también se le llama corteza estriada debido al aspecto que tiene bajo un microscopio electrónico. La información proveniente de los núcleos geniculados dorsales entran en la capa 4 de la corteza estriada. La corteza estriada rodea a la cisura calcarina. RetinotopiaLa distancia desde la fóvea hacia otro punto de la retina se le llama excentricidad retinal. La representación en la corteza visual primaria es cada vez menor a medida que nos alejamos de la fóvea. 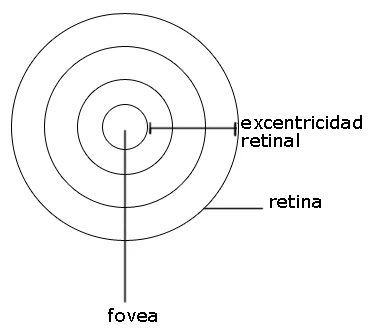 Representación retinotópicaLa fóvea es la que tiene más representación en la corteza, sigue la que está enseguida de la fóvea, y así sucesivamente va disminuyendo la representación a medida que nos alejamos de la fóvea. 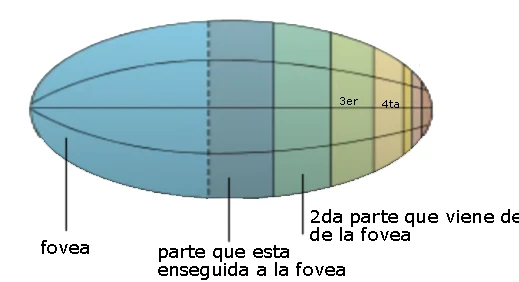 Columnas de dominancia ocularSon las columnas presentes en la corteza visual primaria, cada columna procesa la información de cada ojo y se alternan entre sí. 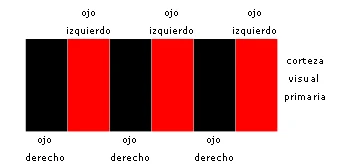 Las neuronas de la corteza estriada responden a distintas características de los estímulos, como el color, la orientación, dirección del movimiento, contraste, etc. Las columnas que responden al mismo estimulo estan conectadas entre si. La mayoría de las neuronas de la corteza estriada modifican su tasa de respuesta según la orientación del estímulo. Algunas neuronas sensibles a la orientación tienen campos receptores organizados de forma oponente, estas se denominan células simples. Las células simples son excitadas cuando por ejemplo "una barra" (objeto, etc) con la orientación específica que excita a esas células se sitúa en el centro del campo receptor, pero estas células simples se inhiben si la barra se mueve fuera de esa posición. Otros tipos de neuronas sensibles a la orientación: Células complejas: también responden mejor a una barra con una orientación determinada pero no presentan inhibición si la barra se mueve a su periferia, de hecho sigue respondiendo aun cuando la barra está en la periferia. Una características de estas células complejas es que responden tanto a barras luminosas sobre fondo negro como a barras negras sobre como blanco. Células hipercomplejas: responden a barras con una orientación determinada, pero tienen, coincidiendo con uno de los extremos de la barra o a veces con ambos extremos, una región inhibitoria que permite a estas células detectar la localización de los extremos o bordes finales de las barras con esa orientación determinada. Disparidad retinianaLos ojos estan en posiciones ligeramente distintas. Por lo tanto cada ojo percibe una imagen de un objeto un poco distinta de la otra (aunque el objeto este situado en un lugar fijo delante nuestro) y eso nos permite percibir las cosas en tres dimensiones a partir de la integración de estas dos imágenes. A las pequeñas diferencias entre las imágenes de las dos retinas se le llama disparidad retiniana. Procesamiento de alto nivelEs la integración y asociación de las características de los estímulos visuales junto con la información proveniente de otros sentidos y la información previa, memorias, emociones, etc. Corteza extraestriada: Rodea la corteza estriada y recibe proyecciones de ella. Generalmente en las vías sensoriales hay una organización jerárquica en los niveles de procesamiento. El nivel de procesamiento más básico de la vista es la retina y el procesamiento de alto nivel se produce en las areas de asociacion. Una vez que llegan los estímulos a la corteza estriada y pasa a la corteza extraestriada se van integrando esos estímulos hasta que finalmente en el lóbulo parietal en el área de asociación se produce la información de la localización del objeto en el espacio. Toda esa ruta es llamada ruta dorsal o ruta ¿donde? Después tenemos también la ruta ventral o ruta ¿que? que es donde se produce la identificación del objeto que estamos viendo. El cerebro construye el percepto visual a tres niveles.
La percepción visual es mucho más que captar las imágenes, es un proceso creativo que integra múltiples niveles de procesamiento y múltiples modalidades sensoriales para terminar en el reconocimiento del objeto. La imagen que vemos e intentamos reconocer la vamos a integrar a la información que tenemos de esa imagen: Vamos a:
Los humanos tenemos neuronas que se especializan en reconocer caras. Pareidolia: es ver caras donde no las hay, como por ejemplo en autos, etc. 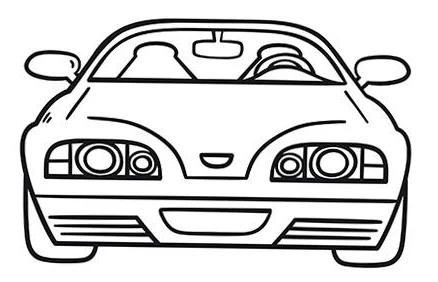 Sistema auditivoEl estímulo de la audición son movimientos de las moléculas de aire. Los objetos cuando vibran hacen mover las moléculas de aire en ciclos de:
Estas moléculas forman ondas que se desplazan, esto se conoce como ondas sonoras. La onda sonora tiene 3 propiedades o parámetros que podemos percibir:
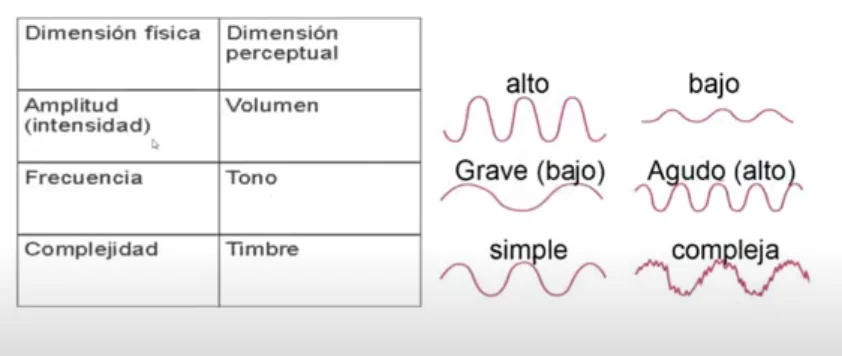 La dimensión física es como es la onda. La dimensión perceptual es como la percibimos.
Volumen
Frecuencia
Timbre
Los humanos percibimos sólo una parte del rango posible de la frecuencia de ondas (al igual que con los colores) Solo percibimos las vibraciones del aire cuya frecuencia se encuentra entre los 20 y 30.000 Hertz. Las frecuencias que son mayores a 30.000 son ultrasonidos y las frecuencias que están por debajo de 20 son infrasonidos. La intensidad del sonido, el volumen, se mide en decibeles. Los decibeles son una escala comparativa, no es absoluta, y tampoco es una escala lineal. Esto quiere decir que la diferencia entre 0 y 10 decibeles es que el "10" es 10 veces más fuerte que el "0", sin embargo la diferencia entre 10 y el 20 decibeles es distinta, ya que el "20" es 100 veces más fuerte que el "10", y la diferencia entre 20 y 30 decibeles es que el "30" es 1000 veces más fuerte que el "20. Los sonidos que están por encima de 90 decibeles (dB) dañan el oído interno. La complejidad de la onda - TimbreEl diapasón por ejemplo produce un sonido puro, con una sola frecuencia. 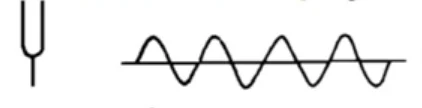 Pero hay otros instrumentos e incluso la voz humana que sus ondas están formadas por varias frecuencias mezcladas. Flauta: 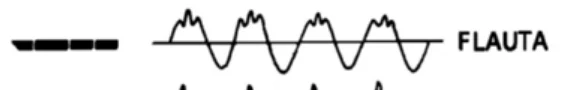 Voz: 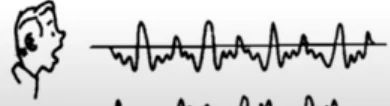 No fusionamos las distintas frecuencias (como ocurre con los colores) sino que las escuchamos por separado. Por eso podemos diferenciar instrumentos musicales al escuchar una orquesta. Es por esto que se dice que el oído es un órgano analitico. Mientras más baja sea la frecuencia de un sonido, más volumen tendrá que tener para que lo percibamos. A medida que envejecemos necesitamos más volúmenes para percibir las altas frecuencias, mientras que para las frecuencias más bajas el umbral es menor y no cambian tanto con la edad. Anatomia del oidoConsta de 3 partes bien definidas, anatómica y funcionalmente.
Oído externo: se compone de el pabellón auricular (oreja), está formada por piel y cartílago y su función es reflejar las ondas sonoras y las conduce hacia el conducto auditivo externo. Los pliegues de la oreja tienen propiedades físicas que permiten reflejar de forma diferencial esas ondas para dirigirlas al conducto auditivo externo dependiendo de las propiedades de esas ondas y de la dirección de que provengan. Por lo tanto otra de sus funciones es ayudarnos a localizar la fuente de los sonidos en el espacio. Conducto auditivo externo: empieza en la oreja y mide aproximadamente 3 cm en los adultos. Tiene células que provocan secreciones (cera) cuya función es proteger al oído de partículas que vengan del exterior. Los pelos del conducto tienen la misma función. El conducto auditivo externo termina en el tímpano, también llamado membrana timpánica. Tímpano: vibra como respuestas a las ondas sonoras que le llegan. El tímpano tiene 9 mm de diámetro. Oído medio: es donde se encuentran los huesecillos del oído.
Obtienen estos nombres debido a la forma que tienen. El martillo está unido a la membrana timpánica y el estribo está unido a una membrana que está sobre la ventana oval. La cavidad del oído medio está llena de aire y los huesecillos del oído lo que hacen es amplificar las vibraciones del tímpano y transmitirlas a la cóclea. El estribo percute sobre la ventana oval con recorridos más cortos pero con más fuerza que los que hace la membrana timpánica contra el martillo. Los huesecillos del oído están sostenidos por ligamentos que los mantienen en posición. El ligamento interior del martillo y el ligamento posterior del yunque. Estos ligamentos son muy importantes para mantener el eje de los huesecillos en posición. Anatomía de la cócleaEn el oído interno se encuentra la cóclea. Características:
Dentro de la cóclea hay una estructura membranosa y hay liquidos. Entre el hueso y la parte membranosa hay un líquido llamado perilinfa. Entre las dos partes membranosas hay otro líquido llamado Endolinfa. 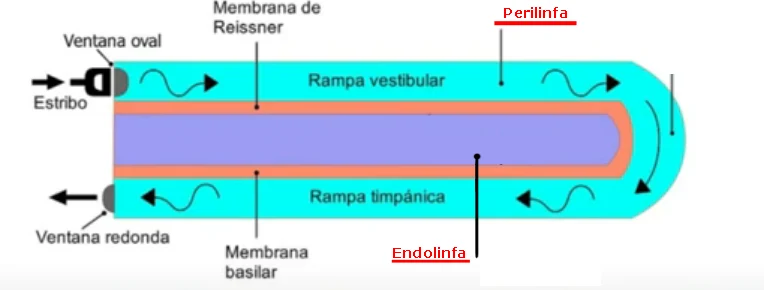 Funcionamiento de la cóclea:
La cóclea tiene una membrana que tiene dos nombres, según donde esté ubicada, la que está contra la rampa vestibular se llama Membrana de Reissner y la que está contra la rampa timpánica se llama Membrana basilar. Para que quede más claro, la cóclea, que tiene forma de caracol, tiene una rampa (vestibular) que sube hasta cierto punto en ese espiral(da varias vueltas en espiral y llega hasta cierto punto), ese punto se llama helicotrema, a partir de esa última vuelta en la helicotrema comienza a descender, esa sección que desciende es la rampa timpánica. Cuando la Perilinfa está en movimiento también se mueven las dos membranas, lo que produce que se mueva a su vez la Endolinfa. Membrana basilarPor dentro de la cóclea se encuentra la membrana basilar, recorre toda la cóclea y desarrollada mide aproximadamente 33 mm. La membrana basilar codifica las propiedades de la onda sonora. El volumen lo codifica con la amplitud de esas vibraciones, o sea el desplazamiento vertical que hace la membrana basilar en respuesta a la onda sonora. El máximo volumen tolerable solo mueve a la membrana basilar 150 nanómetros. La membrana basilar también codifica la frecuencia de la onda. Mapa tonotópicoEs una especia de mapa de frecuencias que está representado en la membrana basilar y que logra codificarlas.
Por lo tanto el lugar de la membrana basilar que vibra nos está codificando la frecuencia de la fuente sonora. Una onda sonora compuesta de varias frecuencias hace vibrar a la membrana basilar en diferentes lugares al mismo tiempo. La rampa media de la cóclea tiene al órgano de Corti. Este es el órgano de la transducción. La membrana basilar está en la base de este órgano. El órgano de Corti consiste de:
En el órgano de Corti hay células de soporte (células de Deiter) que se apoyan en la membrana basilar y además están las células ciliadas. Las células ciliadas son las que realizan la transducción. Por encima de las células ciliadas hay una membrana llamada membrana tectoria, que también vibra. Hay células ciliadas externas e internas. La cóclea humana contiene 3.500 células ciliadas internas y 12.000 células ciliadas externas. Estas células tienen cilios que las conectan con la membrana tectoria. Cuando "llega" el sonido, la membrana basilar y la tectoria se mueven y esto hace que las cilias de las células ciliadas se muevan también y por lo tanto cambien de posición. Este movimiento de las cilias es lo que produce el cambio de potencial de membrana de las células ciliadas, ese estímulo mecánico se va a transducir en un potencial eléctrico (potencial receptor). Este potencial eléctrico es local, proporcional a la intensidad del estímulo y si es despolarizante la célula ciliada va a liberar más neurotransmisores, si el potencial eléctrico es hiperpolarizante la célula ciliada va a liberar menos neurotransmisores. Células ciliadasEl cilio más grande se llama Kinocilio y los más pequeños se llaman Estereocilios. Cuando las cilias se mueven en la dirección del Kinocilio la célula se despolariza, y cuando se mueven en el sentido contrario se hiperpolariza. Cuando la célula ciliada se despolariza libera más neurotransmisores a la terminar aferente que la rodea. Las células ciliadas no tienen ni axón ni dendritas. La Endolinfa es un medio rico en iones K+. Sólo los extremos de los cilios más altos de las células ciliadas externas están "dentro" de la membrana tectoria. Los canales de los extremos de los cilios están en la endolinfa. En la punta de los cilios hay canales de K+ que se abren por tracción mecánica, ya que estos receptores están conectados por una especie de "resorte" que hace que los receptores se abran cuando los cilios se mueven en dirección al Kinocilio. Eso hace que entre K+ a la célula y se despolarice. Los "resortes" de la punta de los cilios se conocen como uniones de las puntas. La transducción de las células ciliadas es electromecánica y es la más rápida de las vías sensoriales. Los resortes que conectan los receptores de los cilios son muy frágiles y se van degradando con la edad. Vía auditiva - nervio coclearEn el ganglio espiral encontramos a los somas de las neuronas sensoriales cuyas dendritas contactan con las células ciliadas. Las células ciliadas hacen sinapsis con las dendritas de neuronas bipolares cuyos axones llevan la información auditiva al encéfalo. El ganglio espiral se llama así porque está enrollado siguiendo la espiral de la cóclea. Los axones de estas neuronas sensoriales forman el nervio coclear que es la rama del nervio auditivo que se dirige a los centros superiores de la vía auditiva. El nervio coclear está formado por 50.000 axones aferentes. El 95% de esos axones es de las neuronas sensoriales cuyas dendritas contactan con las células ciliadas internas. Estos axones son mielínicos y gruesos y por lo tanto su velocidad de conducción es muy alta. La mayoría de las fibras aferentes hacen contacto con una única célula ciliada interna, pero cada célula ciliada interna hace sinapsis con aproximadamente una veintena de fibras. El 5% restante de estos axones son de las neuronas sensoriales cuyas dendritas contactan con las células ciliadas externas. Estos axones no son mielínicos y son pequeños y por lo tanto su velocidad de conducción es mucho menor. En el nervio coclear también hay axones eferentes que llegan desde los centros superiores a las células ciliadas externas y sobre las dendritas que hacen funcionar las células ciliadas internas(las dendritas de las neuronas bipolares). Los axones eferentes tienen su origen en el complejo olivar superior, un grupo de núcleos del bulbo, sus fibras eferentes forman el fascículo olivococlear. En la vía auditiva hay varios núcleos en el camino, varias estaciones de relevo, que van procesando distintas características del estímulo. Está via empieza en el nucleo coclear y termina en las cortezas auditivas. La mayor parte de la información auditiva termina en la corteza auditiva primaria contralateral, pero las cortezas auditivas primarias reciben información de los dos oídos. El mapa tonotópico se mantiene todo a lo largo de la vía auditiva. Incluso se mantiene en la corteza auditiva primaria. 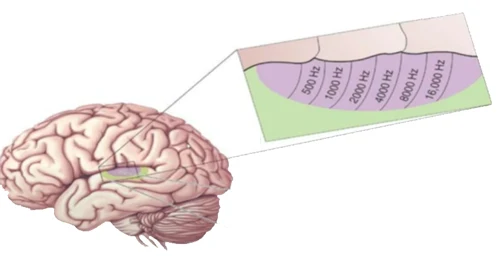 Las áreas de asociación donde se procesan otras características del estímulo estan alrededor de la corteza auditiva primaria. Localización de fuente de sonido usando diferencia interauralLa cabeza hace una sombra sonora que filtra las altas frecuencias. El sonido llega antes al oído que tiene más cerca y con más intensidad por la sombra que hace la cabeza. Estas diferencias son muy pequeñas y son captadas por neuronas que hay en una estación de la vía llamada complejo olivar superior. Complejo Olivar superior:Contiene los circuitos que analizan la localización de las fuentes sonoras según el tiempo de llegada, denominado diferencia de fase y las diferencias de intensidad. Estas neuronas se llaman neuronas detectoras de coincidencias. Estas dos diferencias, aunque muy pequeñas, son suficientes para poder saber de donde proviene el sonido. El sistema auditivo termina en 2 rutas.
En estas áreas se da la integración multimodal y podemos saber que es el sonido que escuchamos y donde se encuentra. Agnosia auditivaSi la corteza de asociación auditiva sufre lesiones se pueden producir agnosias auditivas, que son incapacidades de entender el significado de los sonidos aun cuando la persona no es sorda. Si la lesión se produce en el hemisferio izquierdo, la persona puede padecer formas concretas de alteraciones del lenguaje. Si la lesión se produce en el hemisferio derecho, la persona puede ser incapaz de reconocer la naturaleza o la localización de sonidos no verbales. Sistema vestibularSus funciones incluyen:
Nos da 2 tipos de información muy importante.
Nos permite mantener el equilibrio y mantener fijo el campo visual a pesar de que movamos la cabeza. Los órganos del sistema vestibular son de 2 tipos:
Ambos están en el oído interno. La estimulación del saco vestibular con frecuencias bajas puede producir náuseas La estimulación de los canales semicirculares puede producir vértigo y movimientos rítmicos de los ojos Hay 3 canales semicirculares y están dispuestos en forma perpendicular entre sí.
El sistema vestibular está formado por 5 órganos sensoriales que miden velocidad lineal y angular en la cabeza en cada uno de nuestros oídos. Canales semicircularesDetectan aceleración angular: esto es cambios en la velocidad de rotación de la cabeza en los 3 planos posibles de este tipo de movimiento, esto es porque tenemos cada canal orientado siguiendo cada uno de los 3 planos principales de la cabeza:
A su vez los receptores de cada uno de estos canales tiene su máxima cantidad de respuestas con la aceleración angular en un plano. Por ejemplo, el canal que está posicionado para responder a los movimientos transversales tiene su máxima cantidad de respuestas cuando la cabeza hace un movimiento transversal y no cuando hace uno horizontal. Está formado por un laberinto óseo y uno membranoso. El membranoso está por dentro del óseo y entre ellos tenemos Perilinfa. Por dentro del laberinto membranoso corre la Endolinfa. En esta tenemos una gran cantidad de iones K+ y poca cantidad de iones Na+. Los canales semicirculares de cada oído están dispuestos en forma simétrica pero es la imagen en el espejo uno del otro. Funcionan en complemento entre sí, de modo que se puede detectar la aceleración angular en cualquier plano. El conducto vertical anterior de un lado está en el mismo plano que el conducto vertical posterior del lado contralateral. En los canales semicirculares las células transductoras son células ciliadas. En estos canales hay un ensanchamiento que se llama ampula o ampolla en donde están las células ciliadas colocadas en un lugar que se llama cresta ampular o cresta de la ampolla. 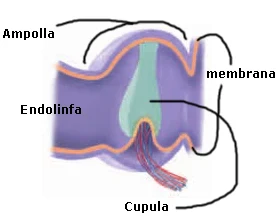 Las cilias de las células ciliadas están inmersas en una masa gelatinosa llamada cúpula. Por ese canal que está la cúpula circula la Endolinfa y cuando giramos la cabeza está Endolinfa se mueve y desplaza a la cúpula, y por lo tanto las cilias se mueven también. 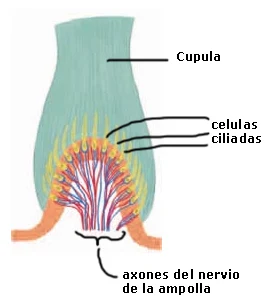 Estas células ciliadas son las que realizan la transducción de la energía mecánica del movimiento de la cúpula a un cambio de potencial de membrana. Las células ciliadas de los canales semicirculares funcionan de manera muy similar a las células ciliadas de la cóclea. Si los cilios se mueven hacia el Kinocilio se produce una despolarización y si se mueven hacia el lado contrario se produce una hiperpolarización. Cuando la célula ciliada se despolariza, la célula aferente aumenta su frecuencia de potenciales de acción. Si la célula ciliada se hiperpolariza, la célula aferente disminuye la descarga de potenciales de acción. Sacos vestibularesLos sacos vestibulares son 2:
Las células ciliadas en estos dos órganos están agrupadas en estructuras llamadas máculas. Cuando estamos posicionados normalmente (derechos), la mácula del utrículo es horizontal y se encuentra en el suelo del utrículo, y la mácula del sáculo es vertical y se encuentra en la pared del sáculo. En las máculas de los sacos vestibulares tenemos otolitos que son cristales de carbonato de calcio. Otolito quiere decir piedra del oído. Cuando nos referimos a la masa de todos los otolitos la llamamos otoconia. Los otolitos están sobre la membrana gelatinosa llamada membrana otolítica. El peso de los otolitos provoca que la membrana otolítica se desplace de posición según los cambios de orientación de la cabeza, moviendo los cilios ya que estos estan "dentro" de esta membrana. Utrículo:
Cuando la cabeza está derecha, la mácula del utrículo está en posición horizontal. Las células ciliadas del utrículo están organizadas de modo que los cilios están orientados en todas las direcciones posibles. Cuando los otolitos se mueven hacia abajo (siempre se mueven hacia abajo) van a estimular solamente a aquellas células ciliadas cuyos cilios siguen la dirección del movimiento. Así se codifica hacía dónde se inclina la cabeza. El Utrículo es el que capta mejor las aceleraciones lineales en el plano horizontal. Saculo:
La mácula del sáculo está en posición vertical cuando la cabeza está derecha. Otra función que tiene el sistema vestibular es mantener constante el campo visual cuando se mueve la cabeza. Esto es gracias a los Reflejos vestíbulo-oculares. El sistema vestibular tiene proyecciones hacia los núcleos que controlan los movimientos oculares. Tenemos 3 tipos de reflejos vestibulares:
Vías vestibulares
Desde el núcleo vestibular el estímulo se va a dirigir a dos lados
El sistema vestibular también envía información al cerebelo. Los cuerpos de las células bipolares que dan lugar a los axones del nervio vestibular estan localizados en el ganglio vestibular. El sistema vestibular es esencial para saber dónde es arriba y hacia dónde nos estamos moviendo. Las sensaciones del sistema vestibular no son conscientes, sin embargo pasan a ser conscientes en situaciones específicas como en el caso de los astronautas en gravedad cero. Crea un montón de trastornos el no poder sentir dónde es arriba y dónde es abajo. Para que tengamos una percepción coherente sobre la posición, la velocidad y los movimientos de nuestro cuerpo para poder mantener la postura es que se integra la información proveniente de los sistemas vestibular, somatosensorial y visual. Está integracion es fundamental para hacer tareas, caminar, andar en bicicleta, mantener el equilibrio mientras caminamos o corremos, etc. Mareo de movimientoOcurre cuando se reciben informaciones contradictorias de los sistemas vestibular y visual, como por ejemplo:
Sistema somatosensorialNos proporciona información de nuestro propio cuerpo, tanto de la superficie como de los órganos internos. La corteza somatosensorial se encuentra en la corteza parietal. Tenemos 3 modalidades de los sentidos somáticos:
Sentidos cutáneos (sentido del tacto)Tenemos varias modalidades:
Células receptoras del sentido del tactoMecanorreceptores: nos dan información sobre vibración y presión. Están encapsuladas, tienen otras estructuras entre la terminal aferente y el estímulo. Estas estructuras acondicionan el estímulo, lo amplifican, lo filtran. Nociceptores: receptores del dolor. Son terminales libres. Termorreceptores: receptores de temperatura. Son terminales libres. Que sea libre quiere decir que no hay nada entre la fibra aferente (dendrita) y el estímulo. Tenemos 3 modalidades generales de estímulos:
La piel es un órgano muy complejo, importante y vital. No podríamos vivir con gran parte de la piel dañada como sucede en los casos de quemaduras. La piel tiene varias capas subcutáneas (dermis y epidermis) y en estas capas se encuentran varios tipos de receptores. Tenemos piel con pelo y piel lampiña. La piel con pelo es casi toda la superficie de nuestro cuerpo. La piel lampiña son las palmas de las manos y las plantas de los pies. En la piel con pelo tenemos:
Las terminaciones nerviosas libres son las que no son encapsuladas. El folículo piloso es una parte del pelo que está dentro de la piel, está rodeado por una terminal libre y es la que nos proporciona información sobre cuando el pelo se mueve. En partes más profundas de la piel con pelo tenemos 2 tipos de mecanorreceptores.
En la piel lampiña hay 2 mecanorreceptores que no están en la piel con pelo.
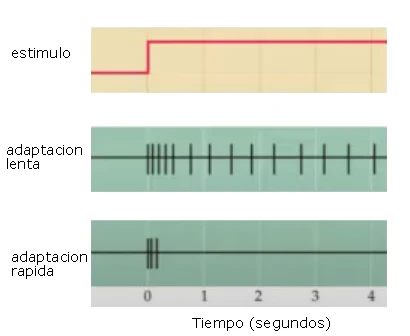
Los mecanorreceptores también tienen campo receptivo. El campo receptivo de un mecanorreceptor es el campo de la piel que al estar en contacto con el estímulo provoca una respuesta en ese mecanorreceptor. Cuanto menor es el campo receptivo, mayor es la capacidad de discriminación. La densidad de mecanorreceptores no es homogénea en toda la piel. En las manos y especialmente los dedos es donde hay mayor cantidad de mecanorreceptores. Los mecanorreceptores de las manos y dedos son los que tienen menores campos receptivos. 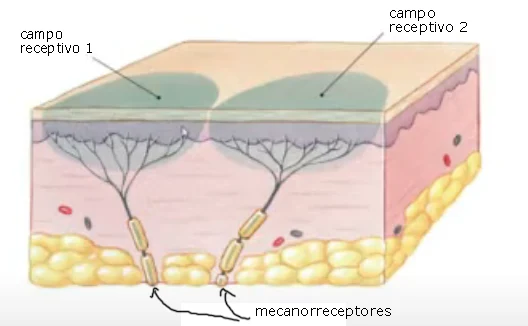 AdaptaciónEs una característica que tienen estos receptores. Cuando un estímulo se repite mucho, este deja de percibirse después de un tiempo. Básicamente los receptores dejan de responder a ese estímulo y dejan de enviar señales al SNC. Hay dos tipos de adaptación:
 Mecanorreceptores de la pielCorpúsculos de Meissner:
 Discos de Merkel:
 Corpúsculos de Pacini:
 Corpúsculos de Ruffini:
 Mecanorreceptores de la piel lampiñaCorpúsculos de Pacini:
Corpúsculos de Ruffini:
Corpúsculos de Meissner:
Discos de Merkel:
Los mecanorreceptores no están distribuidos uniformemente a lo largo de la piel. En la mano: Hay más mecanorreceptores en la palma de las manos, también hay mayor cantidad de mecanorreceptores por unidad de superficie. Y a su vez sus campos receptivos son más pequeños. Algo que nos da una idea sobre tanto el campo receptivo como de la densidad de receptores es la mínima distancia entre dos estímulos próximos en la cual los detectamos como dos estímulos diferenciados Esta distancia mínima para distinguir dos estímulos cercanos no es la misma en todo el cuerpo. TermorreceptoresLas sensaciones de calor y frío son relativas a la temperatura de la piel. Tenemos receptores que señalan temperaturas más bajas, que se llaman receptores de frío. También tenemos receptores que señalan temperaturas más altas que se llaman receptores de calor. Reconocemos 4 tipos diferentes de sensaciones térmicas:
Hasta ahora se han descrito 6 receptores de temperatura en el ser humano. Estos receptores se adaptan y esa adaptación depende de la temperatura a la que estuvo expuesta la piel momentos antes. Hay hasta 3.5 veces más receptores de frío que de calor. O sea que por cada 2 receptores de calor hay 7 de frío. Si la temperatura es menor a 10° o mayor a 45° comenzamos a sentir dolor. Esto significa que tenemos receptores de dolor que se activan cuando las temperaturas alcanzan esas graduaciones. Los receptores de frío y de calor son de adaptación rápida. Además de tener termorreceptores en la piel también tenemos en la córnea, lengua y vejiga. El rango de los receptores de frío es de 0° a 27°/28° más o menos. El rango de los receptores de calor llega hasta los 52° Nociceptores
Hay dos vías para la transmisión del dolor:
Son receptores especializados. Esto quiere decir que son específicamente receptores de dolor, no son otros tipos de receptores que por encima de determinado rango transmiten dolor, sino que su única función es transmitir la sensación de dolor. Hay varios tipos de nociceptores. Mecanosensibles: son mecanorreceptores que se activan con presiones muy grandes sobre la piel. Termosensibles: son sensibles a la temperatura. Cuando la temperatura pasa por determinado rango comienzan a enviar señales. Nociceptores polimodales: Son sensibles a químicos y al calor, como por ejemplo el receptor de la capsaicina. La capsaicina es un componente presente en los chiles picantes, ese componente es el que produce esa sensación de ardor y picazón, esto se debe a que activa a un nociceptor polimodal. Cuando sentimos cierta temperatura y está va aumentando, los termorreceptores aumentan la cantidad de potenciales de acción que descargan hasta cierto límite, una vez pasado ese límite, aunque la temperatura siga aumentando, el termorreceptor no va a aumentar la descarga de potenciales de acción. Sin embargo, los nociceptores comienzan a descargar potenciales de acción cuando la temperatura llegó a ese límite en el que se activan, y a medida que la temperatura aumente, la descarga de potenciales de acción también va a aumentar, y va a seguir en aumento indefinidamente hasta que la temperatura deje de aumentar. Receptores propioceptivosNos informan sobre nuestros músculos y articulaciones. El músculo estriado interviene en los movimientos voluntarios. Las fibras extrafusales son las que realizan la contracción muscular. Dentro del músculo estriado hay una estructura llamada huso muscular donde hay fibras musculares llamadas fibras intrafusales, están dispuestas paralelamente a las fibras extrafusales. En las fibras intrafusales se encuentra enroscada una fibra sensorial llamada sensor de longitud. Cuando el músculo se contrae, como las fibras intrafusales están dentro, ellas también se contraen, por lo tanto esas fibras sensoriales de longitud detectan el estiramiento. Las fibras sensoriales de longitud no detectan la tensión sino que tan estirada está la fibra intrafusal. El músculo está conectado al hueso por el tendón, y en el tendón encontramos un órgano llamado órgano tendinoso de Golgi, este es el que va a detectar la tensión del músculo. Fibra de longitud: detecta el estiramiento de la fibra intrafusal y por lo tanto del músculo Órgano tendinoso de Golgi: detecta la tensión del músculo 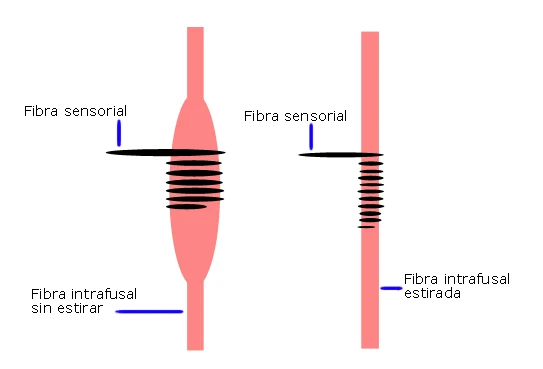 El órgano tendinoso de Golgi está hecho de fibras de colágeno, enroscadas en esas fibras de colágeno se encuentran fibras aferentes sensoriales. El músculo estriado si se tensa demasiado corre el riesgo de desgarrarse, y por lo tanto es muy importante que nuestro cerebro sepa que tan tenso está. Estos receptores son de adaptación rápida y nos van a informar sobre el movimiento de las articulaciones y la posición de las extremidades. Vías somatosensoriales
Las fibras que conducen la información de dolor y temperatura van a cruzar al lado contralateral de la médula espinal. Las fibras que llevan información somatosensorial (mecanorreceptores de la piel) van a cruzar al lado contralateral al nivel del bulbo raquídeo. Ambas vías terminan en la corteza somatosensorial primaria contralateral después de pasar por los núcleos del tálamo. El tálamo tiene muchos núcleos que son estaciones de relevo de las vías sensoriales. Corteza somatosensorial primaria: somatotopiaRepresentación ordenada de las partes del cuerpo en la corteza somatosensorial primaria. Dolor referidoHay pocas fibras sensoriales exclusivas para el dolor visceral y vienen siempre con las del dolor cutáneo, por lo que a veces se confunden. Esto hace que el dolor del organo interno se sienta sobre la piel. Ejemplos:
Procesamiento del dolorEs un proceso complejo que se divide en dos componentes:
El componente emocional también está dividido en dos:
El componente sensorial está mediado por las vías que van desde la médula espinal, núcleo ventral posterior del tálamo y llegan a la corteza somatosensorial primaria y secundaria. El componente emocional inmediato está mediado por vías que llegan a la corteza del cíngulo anterior y a la corteza de la ínsula. El componente emocional a largo plazo está mediado por vías que llegan a la corteza prefrontal. El dolor es fundamental para la supervivencia ya que nos alerta de peligros y enfermedades. Agnosias táctilesSon producidas por lesiones en la corteza somatosensorial de asociación. Agnosia táctil aperceptiva: Se da cuando se produce una lesión en el lóbulo parietal izquierdo. El paciente es incapaz de reconocer objetos corrientes a través del tacto. Al tocar un objeto como una piña de pino el paciente lo identificaba como un cepillo, sin embargo este paciente conservaba la sensibilidad al tacto ligero y al frio y calor de los objetos, y podía discriminarlos, fácilmente, por su tamaño, peso o rugosidad. Agnosia táctil asociativa: Se da cuando se producen lesiones bilaterales de la circunvolución angular, una región del lóbulo parietal que rodea caudalmente el extremo de la cisura de Silvio. El paciente no identifica objetos por el tacto, sin embargo es capaz de dibujar los objetos que tocaba aunque no reconocía que eran. Esto quiere decir que su capacidad de percibir táctilmente objetos de forma tridimensional estaba intacta, pero la lesión impedia que esa información analizada por la corteza somatosensorial de asociación fuera transmitida a las partes del cerebro responsables del control del lenguaje y de la conciencia.
|
Facultad de Psicología (UdelaR)
Dispositivos de atención frente a situaciones de violencia, acoso y discriminaciónEspacios de atención para quienes sienten que están transitando situaciones de acoso y discriminación, y/o para quienes presencian o conviven con situaciones de violencia. Clases particulares
¿Necesitás ayuda con alguna materia?Clases por Zoom, tutorías grabadas y guías con todo el material listo para estudiar. Preparás temas, parciales y exámenes con acompañamiento personalizado. Guías de Facultad ¿Tenés dudas sobre cómo funciona Facultad de Psicología? |